mTORC1信号通路是公认的营养感应中枢:当食物(尤其是氨基酸)充足时,mTORC1被激活,促进蛋白质合成、细胞生长;当营养匮乏时,mTORC1被抑制,细胞进入“节能模式”,寿命得以延长[1, 2]。正因如此,mTORC1抑制剂雷帕霉素(rapamycin)成为目前最受关注的抗衰老候选药物之一,能在多种动物中延长寿命[3]。
然而,长期雷帕霉素治疗会抑制mTORC2,这会对代谢和免疫产生负面影响[3]。因此,探究mTORC1信号通路健康的延寿机制,并在此基础上进行精准干预,达到健康延寿的作用是我们追求的目标。
湖南师范大学翟宗昭团队从果蝇脂肪体中鉴定出一个名为Lsp2的蛋白,其原本被认为只是一个幼虫储存蛋白,但实际上在成虫阶段扮演着mTORC1的“反馈放大器”角色,通过4E-BP调控核糖体蛋白的翻译,进而影响寿命。Lsp2突变果蝇的寿命显著延长,而且不影响繁殖能力和应激抵抗能力。这意味着,其可能是一种健康的抗衰老策略。2026年9月23日,相关工作以“Lsp2 links mTORC1 to TOP mRNA translation and lifespan in Drosophila”为题,发表在Nature杂志上,湖南大学王奕蓉副教授和中国科学院上海营养与健康研究所陆炯明研究员为论文的共同通讯作者。
Lsp2在成虫脂肪体(功能上类似于哺乳动物脂肪组织和肝脏)中表达,并分泌到血淋巴,是一种循环脂肪因子。Lsp2表达具有明显的营养特异性。喂食高蛋白食物后,Lsp2的mRNA在7小时内飙升约80倍;一旦撤去蛋白源,几小时内又迅速回落(图1a)。这种“灵敏响应”让作者怀疑,Lsp2是一个营养状态的感受器。
进一步研究发现,10种必需氨基酸(EAA,果蝇EAA需求与人类大体一致)混合物可强烈诱导Lsp2,而非必需氨基酸(NEAA)则没有作用(图1b);去除大多数单个EAA都会降低诱导;单独提供一种EAA则只能轻微诱导;而饲喂果蝇几种氨基酸的组合也不能有效诱导Lsp2表达。因此,Lsp2的表达水平反映了膳食EAA种类的完整性。这一诱导依赖于mTORC1(图1c):抑制mTORC1时,EAA对Lsp2的诱导完全消失;而在过表达Rheb以激活mTORC1的果蝇中,EAA可进一步上调Lsp2表达。此外,Lsp2的表达还受到胰岛素信号、应激反应(ISR)和蜕皮激素信号的多重把控,只有所有信号都表明“营养充足”,Lsp2才会被大量合成。这意味着,Lsp2是机体营养状态的一个综合感受器。
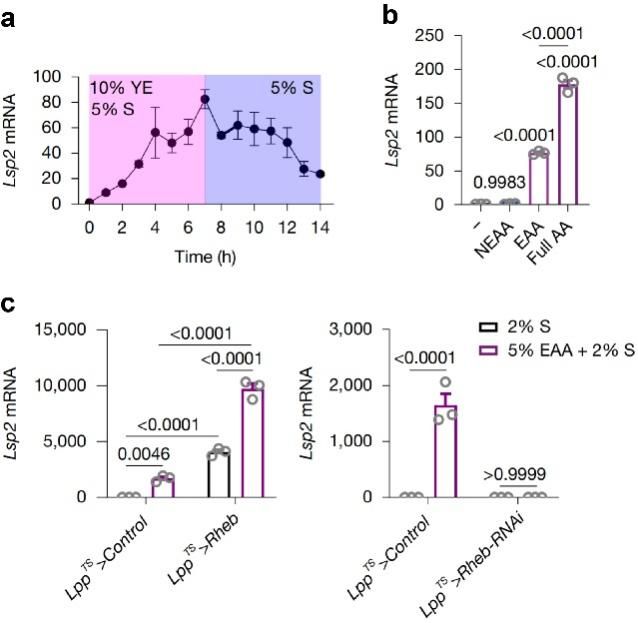
图1 | EAA以mTORC1依赖的方式诱导Lsp2表达
既然Lsp2受氨基酸营养和mTORC1调控,它是否参与寿命调控?作者利用转座子插入和CRISPR-Cas9技术构建了Lsp2突变果蝇。结果令人振奋:在含不同酵母浓度(实验室果蝇的主要蛋白质来源)的食物中,Lsp2突变体的果蝇寿命显著延长(图2a)。另外,这种寿命延长并没有伴随常见的“生命史代价”。这与传统的“资源分配”理论不同,通常认为延长寿命需要以牺牲繁殖为代价[4, 5]。相反,过表达Lsp2则显著缩短寿命(图2b)。这进一步印证了Lsp2的促衰老作用。
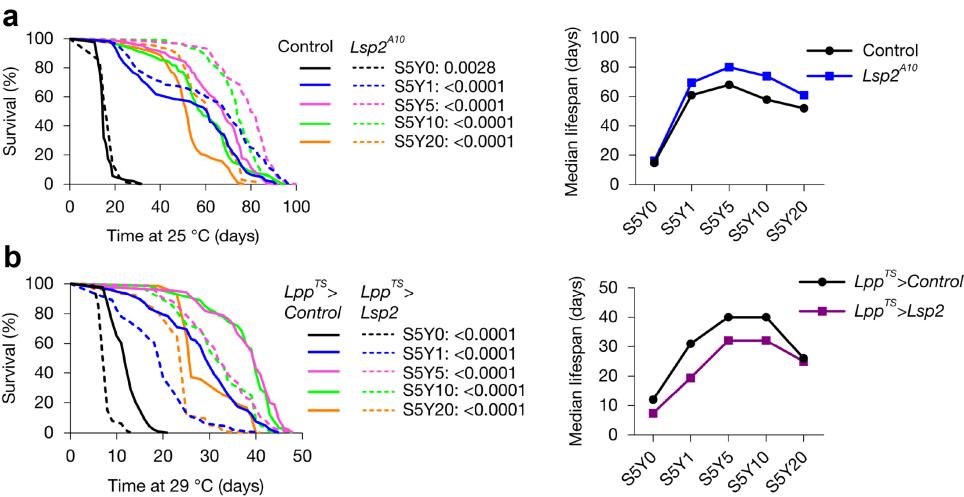
图2 | Lsp2影响果蝇寿命
Lsp2是如何影响寿命的呢?作者首先排除了它影响胰岛素-JH长寿轴的假设以及转录水平的调控。随后,他们将目光投向蛋白质翻译,这是一个极其耗能,且与生物体健康和寿命紧密相关的过程[6]。Lsp2缺失升高了eIF2α磷酸化水平,降低了全局蛋白合成;过表达则呈现相反效应。使用不同剂量的翻译抑制剂环己酰亚胺(CHX)处理果蝇,结果表明,Lsp2突变体中较低的翻译速率可能已接近长寿所需的最优区间。通过多聚核糖体图谱分析(polysome profiling)结合翻译组测序(translatomics),作者发现:在Lsp2突变果蝇中,核糖体蛋白(RP)mRNA的翻译效率(TE)显著下降(图3a)。具体来说,66个翻译效率下调的基因中,有48个是细胞质RP基因,而线粒体核糖体蛋白的翻译则不受影响。尽管翻译效率下降,蛋白质组分析却未检测到RP总丰度发生显著变化。作者认为,Lsp2突变可能通过减少“过度翻译”所消耗的能量,从而释放资源用于维持寿命。
在哺乳动物中,RP编码基因属于TOP mRNA,TOP mRNA是一种位于mRNA 5'端、紧邻帽结构的嘧啶富集序列,其翻译受4E-BP抑制[7]。果蝇基因组仅编码一个4E-BP(果蝇中由Thor基因编码)。当作者将Lsp2突变与4E-BP突变同时引入果蝇时,上述RP翻译的下调被完全消除(图3b),同时寿命延长的效应也基本消失(图3c)。这表明,Lsp2通过4E-BP特异性地调控RP/TOP mRNA的翻译,进而影响寿命。
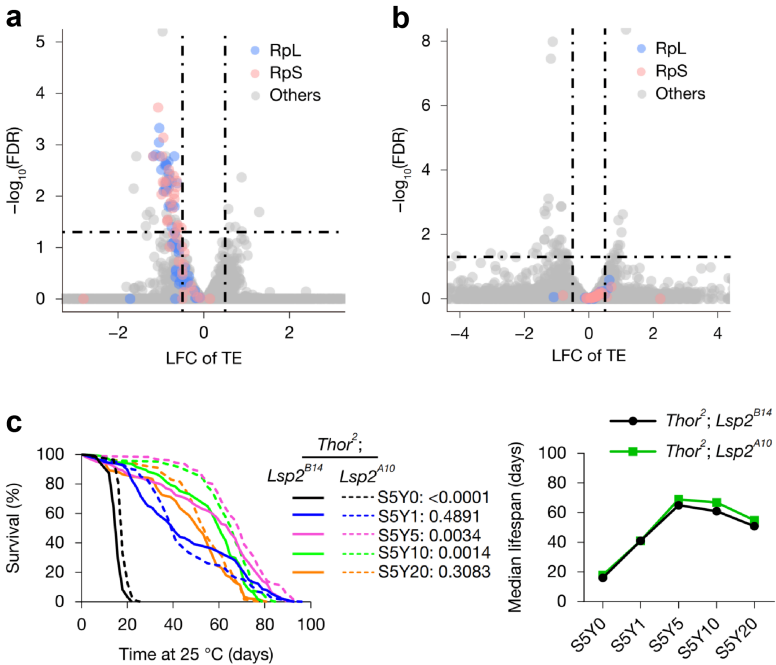
图3 | 4E-BP(果蝇Thor)调控的TOP mRNA翻译是Lsp2突变体延寿的关键
Lsp2如何影响4E-BP?研究发现,Lsp2本身是一个mTORC1的反馈激活因子:它通过增强mTORC1的活性,促进4E-BP的磷酸化,从而解除对TOP mRNA翻译的抑制(图4)。有趣的是,Lsp2对4E-BP的调控是雷帕霉素抵抗型的。雷帕霉素虽然能抑制mTORC1的另一个下游靶标S6K,但不抑制4E-BP的磷酸化。这意味着,Lsp2突变可以实现雷帕霉素无法做到的,精准抑制4E-BP依赖的TOP mRNA翻译。在寿命实验中,低剂量雷帕霉素(1 μM)就能使Lsp2突变体的寿命延长,而野生型果蝇需要更高剂量(50-100 μM)才能看到明显效果(图5)。这进一步说明,Lsp2缺失使果蝇对mTORC1抑制更加敏感,且效果优于单纯用药。
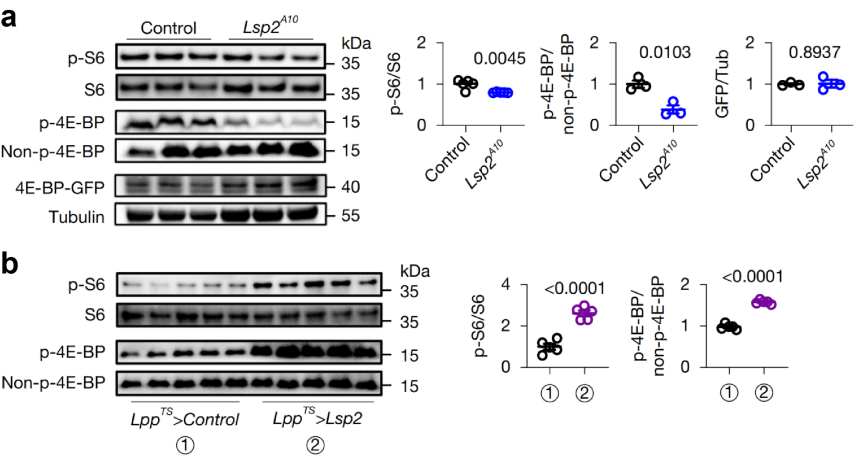
图4 | Lsp2正向调控mTORC1的活力
此前果蝇中尚无TOP基因相关研究,作者系统预测并分析了果蝇的TOP mRNA。通过CAGE-seq数据和TOP score算法,他们预测出果蝇中有136个TOP基因,其中82个编码核糖体蛋白。作者通过构建转基因果蝇证明,果蝇TOP基序确实具有增强翻译的功能。更有意思的是,TOP基序和4E-BP在进化上几乎是同时期出现,而在低等真核生物(酵母、线虫)和植物中,两者都缺失;而在果蝇和哺乳动物中,两者同时存在。这表明,4E-BP - TOP调控系统是后生动物进化出的一种“营养感应-翻译调控”模块,专门用来协调生长和寿命。
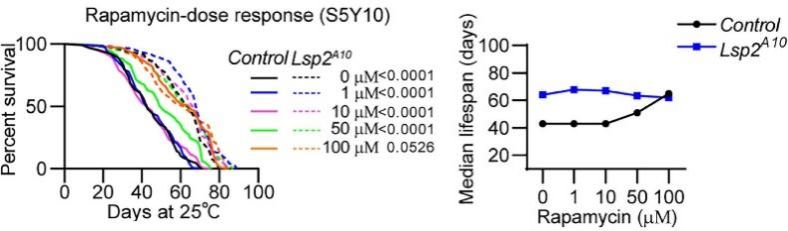
图5 | 雷帕霉素影响Lsp2突变果蝇寿命
综上,翟宗昭课题组发现了一个由营养物质诱导产生的脂肪因子Lsp2,并揭示了Lsp2作为mTORC1的反馈放大器,通过4E-BP选择性地促进TOP mRNA(尤其是核糖体蛋白mRNA)翻译、进而加速衰老的具体机制,这一发现补全了机体如何感知氨基酸信号的完整性并将其转化为mTORC1的输出放大、最终通过翻译调控驱动衰老进程的空白。同时,对于Lsp2调控4E-BP - TOP翻译延寿机理的解析,也为开发靶向翻译调控、规避雷帕霉素副作用的新型抗衰老药物提供了新的理论和靶点。同时,他们提出了一个概念,即在机体水平上存在一种诱导机制来放大mTORC1的输出,作为一个资源门控的能量利用开关。禁用这个开关能带来深远的健康益处,同时完全保留了mTORC1营养感应通路的完整性。
这项研究提出了一个有趣的问题:如果人类中也存在类似的“营养-翻译放大器”的开关,那么通过调控它来延缓衰老,或许比直接限制饮食更加可行。
据悉,这篇文章的第一作者王骏是湖南师范大学2019级博士生,于2024年留校开展博士后研究工作。据翟宗昭教授介绍,王骏于2019年进入其实验室攻读博士学位,也是翟老师指导的第一位博士生。他从2021年初偶然发现Lsp2的表达受蛋白质特异调控后,便正式开启了这一课题的研究,为这个课题倾注了长达五年半的心血。在研究过程中,他们最初曾考虑Lsp2可能参与果蝇对蛋白食物的选择行为,但相关实验的结果并不理想;然而,一次偶然的实验却揭示,过表达Lsp2会急剧缩短果蝇的寿命,这一发现为课题提供了全新的突破口,也促使他们及时调整了研究方向。面对波折,王骏没有气馁,而是一心扑在实验上,专注而扎实地完成了整个机制的解析,极大地激励了课题组的每一位成员。此外,本文的共同第一作者湖南大学王奕蓉课题组的博士生蔡子欣,承担了转录组学、翻译组学和蛋白质组学等关键分析工作,他们与论文的其他作者以及翟宗昭课题组的全体成员一道,都为这项研究作出了不可替代的重要贡献。
原文链接:https://doi.org/10.1038/s41586-026-11029-x
参考文献:
1. Liu GY, Sabatini DM: mTOR at the nexus of nutrition, growth, ageing and disease. Nat Rev Mol Cell Biol 2020, 21(4):183-203.
2. Grandison RC, Piper MDW, Partridge L: Amino-acid imbalance explains extension of lifespan by dietary restriction in Drosophila. Nature 2009, 462(7276):1061-1064.
3. Mannick JB, Lamming DW: Targeting the biology of aging with mTOR inhibitors. Nature Aging 2023, 3(6):642-660.
4. Tatar M, Kopelman A, Epstein D, Tu MP, Yin CM, Garofalo RS: A mutant Drosophila insulin receptor homolog that extends life-span and impairs neuroendocrine function. Science 2001, 292(5514):107-110.
5. O'Brien DM, Min KJ, Larsen T, Tatar M: Use of stable isotopes to examine how dietary restriction extends Drosophila lifespan. Curr Biol 2008, 18(4):R155-156.
6. Sonenberg N, Hinnebusch AG: Regulation of translation initiation in eukaryotes: mechanisms and biological targets. Cell 2009, 136(4):731-745.
7. Thoreen CC, Chantranupong L, Keys HR, Wang T, Gray NS, Sabatini DM: A unifying model for mTORC1-mediated regulation of mRNA translation. Nature 2012, 485(7396):109-113.